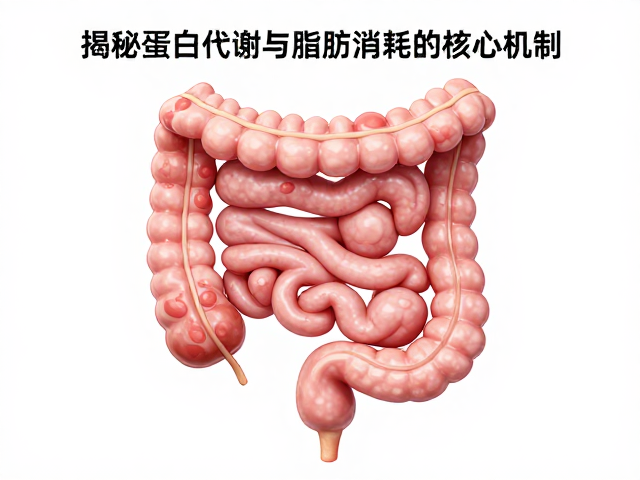
氨基酸进入小肠的吸收路径
蛋白质在消化道内并不会直接以完整形态被吸收,而是经历严密的分解过程。胃蛋白酶与胰蛋白酶协同作用,将长链蛋白质切割为多肽片段,随后肠激酶激活胰蛋白酶原,进一步将多肽水解为短肽及游离氨基酸。这一生化分解步骤是后续吸收的基础,确保了只有最小单位的分子才能通过肠黏膜屏障。
肠上皮细胞表面存在多种特异性转运蛋白,负责将分解产物从肠腔转移至细胞内部。钠依赖性氨基酸转运体(如B⁰AT1)利用钠离子梯度,主动摄取中性氨基酸;而质子偶联的肽转运蛋白(PepT1)则高效处理二肽和三肽。这种多通道、多机制的运输网络,确保了人体能根据生理需求灵活应对不同来源和大小的氨基酸分子。
跨膜转运与入血机制
进入肠上皮细胞后,游离氨基酸通过基底侧膜上的易化扩散载体离开细胞,进入毛细血管网。这一过程不消耗能量,完全依赖细胞内外氨基酸的浓度差。与此同时,那些被转运进细胞的短肽会被胞内的肽酶迅速水解为单个氨基酸,随后同样通过基底侧膜进入血液循环,这种“先吸收后分解”的策略极大地提高了吸收效率。
门静脉系统承载着这些富含氨基酸的血液,将其直接输送至肝脏进行初步代谢调控。肝脏作为人体的代谢中枢,会根据全身能量状态和营养需求,决定将氨基酸用于蛋白质合成、转化为葡萄糖或脂肪酸,还是进入其他组织供能。这种严密的分配机制,使得氨基酸不会无序堆积,而是精准投放至需要的部位。
蛋白质代谢的能量关联
氨基酸在体内并非孤立存在,其代谢路径与能量状态紧密相连。当机体处于能量充足状态,多余的氨基酸碳骨架可通过糖异生或脂肪合成途径转化为葡萄糖或甘油三酯。然而,在能量不足时,氨基酸的脱氨基作用增强,氮元素转化为尿素排出,碳骨架则进入三羧酸循环氧化供能,这一过程直接参与了脂肪消耗的能量替代机制。
肌肉组织是氨基酸代谢的重要场所。运动或饥饿状态下,骨骼肌分解代谢加速,支链氨基酸(BCAA)被释放入血,供肝脏或其他组织利用。这种肌肉蛋白的分解会暂时增加基础代谢率,因为维持代谢活跃的组织需要消耗更多能量。因此,蛋白质代谢的动态平衡直接影响着体内脂肪储备的变动趋势。
脂肪消耗与蛋白质互作
脂肪分解代谢(脂肪分解)产生的能量需求,部分依赖于氨基酸代谢提供的中间产物。当体内糖原储备不足,脂肪组织中的甘油三酯被分解为脂肪酸和甘油。脂肪酸进入肌肉和肝脏细胞进行β-氧化产生能量,而这一过程需要蛋白质代谢产生的酶和载体蛋白参与。若蛋白质摄入不足,这些关键酶的合成受阻,脂肪分解效率可能下降,导致能量供应出现缺口。
此外,某些氨基酸如亮氨酸,能激活mTOR信号通路,促进蛋白质合成代谢。虽然这主要关乎肌肉构建,但代谢通路的交叉调控也影响着脂质代谢相关基因的表达。保持充足的优质蛋白摄入,有助于维持代谢网络的稳定性,使脂肪消耗过程更加顺畅,避免因代谢紊乱导致的能量储存异常。
关键影响因素与生理调节
肠道健康状况直接影响氨基酸的吸收效率。肠黏膜的完整性、消化酶的分泌水平以及肠道菌群的环境,共同决定了蛋白质分解和吸收的效果。例如,肠道炎症或酶缺乏会导致蛋白质消化不全,未完全分解的多肽进入大肠后发酵,不仅降低氨基酸利用率,还可能引发不适,间接影响整体代谢状态。
年龄与生理阶段也是不可忽视的变量。儿童、孕妇及高强度运动人群对氨基酸的需求显著高于普通成年人,其吸收机制处于高活跃状态。随着年龄增长,消化酶活性可能下降,吸收效率随之波动。了解这些生理差异,有助于更准确地理解蛋白质代谢与脂肪消耗之间的动态联系,从而通过科学饮食维持代谢平衡。